免疫の働きは、遺伝子や、遺伝情報から作られるタンパク質だけでは説明できません。免疫細胞が置かれた栄養・酸素環境や、細胞内のエネルギー代謝状態によっても、免疫の活性化・増殖・分化・炎症の収束などが大きく異なってきます[408,409]。そして、これまで述べてきた通り、ミトコンドリアが中心となって行われているエネルギー代謝は、生命の根幹を担っているというお話でしたが、免疫もその例外ではありません。
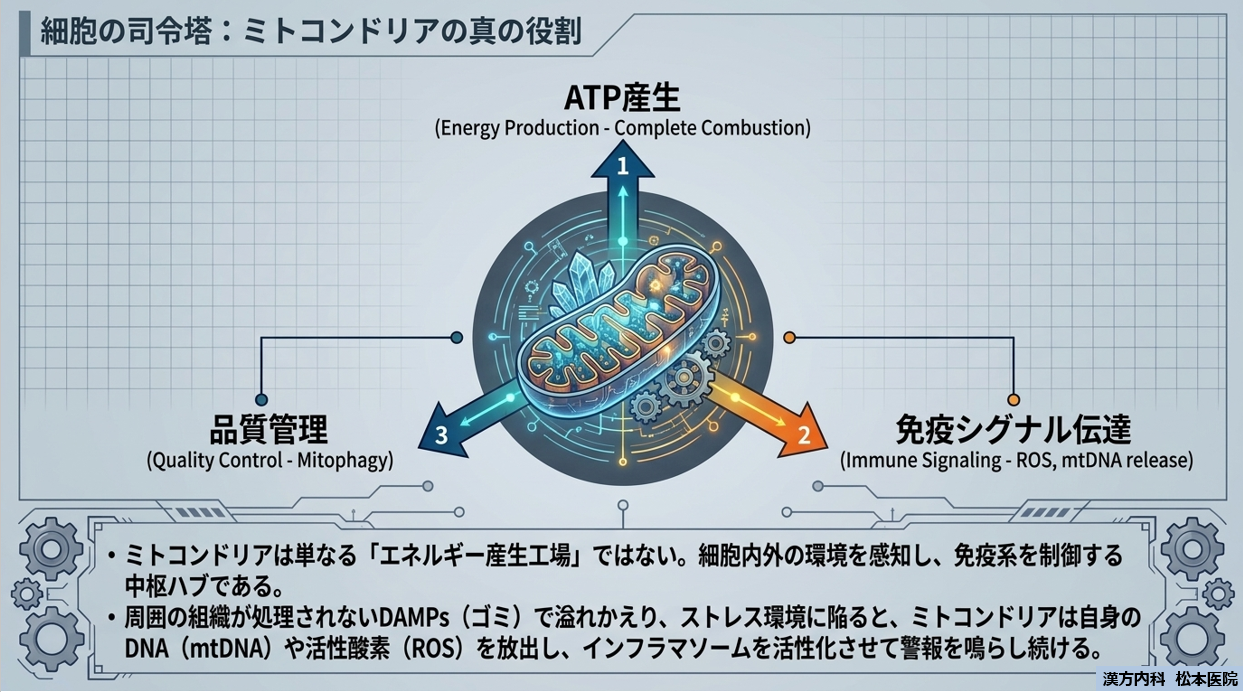
ミトコンドリアは、酸化的リン酸化によってATPを供給するだけでなく、活性酸素(ROS)、代謝産物、免疫シグナル、細胞死の調節を通じて、免疫反応の強度や方向性に関わっています。したがって、ミトコンドリアは単なる「発電所」ではなく、代謝と免疫を結び付ける制御拠点と捉えることができます[392,398,406,410-412]。
その一例ですが、ミトコンドリア由来の活性酸素(ROS)には二面性があることが知られています。過剰なROSは細胞を傷つけますが、適切な量のミトコンドリア由来ROSは、免疫細胞が正常に働くための情報伝達にも必要です。実際、マウスのT細胞では、ミトコンドリア由来ROSの生成を妨げると、抗原刺激に対する活性化やIL-2の産生が障害されました[410]。以上のことからROSは、単に少なければよいというものではありません。
また、ミトコンドリアに関わる代謝産物も免疫を調節します。例えば、刺激を受けたマクロファージでは、TCA回路の中間体であるコハク酸の蓄積が、HIF-1αを介して炎症性サイトカインIL-1βの産生を促すことが示されています。重要なのはミトコンドリアで産生されるエネルギーとしてのATPの量だけでなく、代謝経路がどう組み替えられ、どの物質が蓄積するかという点です[398]。
さらに、ミトコンドリアは外敵やごみ処理に対する免疫応答の足場にもなります。外膜に存在するMAVSというタンパク質は、細胞内でウイルスRNAを検知した情報を受け取り、インターフェロンなどの産生につなげます[411]。これは、ミトコンドリアが免疫の情報伝達に直接参加する例です。一方、損傷したミトコンドリアから漏れ出したミトコンドリアDNA(mtDNA)は、存在する場所や状態によって、危険を知らせる信号になります。細胞質のmtDNAによるcGAS–STING経路の活性化や、酸化mtDNAによるNLRP3インフラマソームの活性化が報告されています[392,412]。ただし、こうした応答は感染防御にも役立ち、持続・過剰化した場合には病的な炎症につながり得ます。そこで重要になってくるのが、先述した損傷したミトコンドリアを除去するマイトファジーなどの品質管理です。オートファジー関連タンパク質の欠損によって、機能不全のミトコンドリアや細胞質のmtDNAが増え、炎症反応が強まる実験結果もあります[406]。
ただし、「ミトコンドリア機能低下やエネルギー不足は必ず炎症を強める」とは言えません。障害される細胞や程度によって、防御反応が弱まる場合も、炎症を抑える機能が失われる場合もあります。実際、制御性T細胞の呼吸鎖複合体IIIを欠損させたマウスでは、免疫抑制機能が損なわれ、重い炎症が生じたことが報告されています[413]。
つまり、免疫の健全さには、十分なエネルギー供給に加えて、適切な代謝の切り替え、信号伝達、ミトコンドリアの品質維持が必要です。ミトコンドリアは、免疫機能に必要なエネルギーを供給するとともに、他の免疫制御機構と協働しながら、防御と炎症の収束の両方を支えており、免疫応答の要として働いていると言えるでしょう[414]。
参考文献▽
[408] T. Cramer, Y. Yamanishi, B.E. Clausen, I. Förster, R. Pawlinski, N. Mackman, V.H. Haase, R. Jaenisch, M. Corr, V. Nizet, G.S. Firestein, H.-P. Gerber, N. Ferrara, R.S. Johnson, HIF-1α Is Essential for Myeloid Cell-Mediated Inflammation, Cell 112 (2003) 645–657. 10.1016/S0092-8674(03)00154-5.
[409] L.Z. Shi, R. Wang, G. Huang, P. Vogel, G. Neale, D.R. Green, H. Chi, HIF1alpha-dependent glycolytic pathway orchestrates a metabolic checkpoint for the differentiation of TH17 and Treg cells, J Exp Med 208 (2011) 1367–1376. 10.1084/jem.20110278.
[410] L.A. Sena, S. Li, A. Jairaman, M. Prakriya, T. Ezponda, D.A. Hildeman, C.R. Wang, P.T. Schumacker, J.D. Licht, H. Perlman, P.J. Bryce, N.S. Chandel, Mitochondria are required for antigen-specific T cell activation through reactive oxygen species signaling, Immunity 38 (2013) 225–236. 10.1016/j.immuni.2012.10.020.
[411] R.B. Seth, L. Sun, C.-K. Ea, Z.J. Chen, Identification and Characterization of MAVS, a Mitochondrial Antiviral Signaling Protein that Activates NF-κB and IRF3, Cell 122 (2005) 669–682. 10.1016/j.cell.2005.08.012.
[412] K. Shimada, Timothy R. Crother, J. Karlin, J. Dagvadorj, N. Chiba, S. Chen, V.K. Ramanujan, Andrea J. Wolf, L. Vergnes, David M. Ojcius, A. Rentsendorj, M. Vargas, C. Guerrero, Y. Wang, Katherine A. Fitzgerald, David M. Underhill, T. Town, M. Arditi, Oxidized Mitochondrial DNA Activates the NLRP3 Inflammasome during Apoptosis, Immunity 36 (2012) 401–414. 10.1016/j.immuni.2012.01.009.
[413] S.E. Weinberg, B.D. Singer, E.M. Steinert, C.A. Martinez, M.M. Mehta, I. Martínez-Reyes, P. Gao, K.A. Helmin, H. Abdala-Valencia, L.A. Sena, P.T. Schumacker, L.A. Turka, N.S. Chandel, Mitochondrial complex III is essential for suppressive function of regulatory T cells, Nature 565 (2019) 495–499. 10.1038/s41586-018-0846-z.
[414] S. Zhang, S. Weinberg, M. DeBerge, A. Gainullina, M. Schipma, J.M. Kinchen, I. Ben-Sahra, D.R. Gius, L. Yvan-Charvet, N.S. Chandel, P.T. Schumacker, E.B. Thorp, Efferocytosis Fuels Requirements of Fatty Acid Oxidation and the Electron Transport Chain to Polarize Macrophages for Tissue Repair, Cell Metab 29 (2019) 443–456.e445. 10.1016/j.cmet.2018.12.004.
まだコメントはありません。